
Tabla de Contenidos
Introducción
La resistencia a los plaguicidas (insecticidas, herbicidas y fungicidas) constituye uno de los problemas más acuciantes para la agricultura moderna y la salud pública a nivel global. Se define como la capacidad heredable de un organismo plaga para sobrevivir a dosis de un plaguicida que serían letales para la mayoría de los individuos de la misma especie en condiciones normales. Este fenómeno representa un ejemplo paradigmático de evolución rápida bajo presión selectiva intensa, y ha sido calificado como un “problema perverso” (wicked problem) por sus dimensiones ecológicas, genéticas, económicas y sociopolíticas entrelazadas [2].
Se estima que las pérdidas de cosechas debidas a plagas superan el 50% a nivel global dependiendo del cultivo, y la resistencia de estas plagas a los agentes químicos de control ha sido documentada para numerosas combinaciones de plaguicidas y especies [10].
1. Orígenes Evolutivos de la Resistencia
1.1 Mutaciones de novo vs. variación preexistente
La resistencia a los plaguicidas puede originarse a partir de mutaciones nuevas (de novo) que aparecen después de la introducción del compuesto, o a partir de variación genética preexistente en las poblaciones naturales. Hawkins et al. [1] realizaron una revisión comparativa de los tres grandes grupos de plaguicidas y encontraron diferencias significativas:
- Resistencia a fungicidas: suele evolucionar principalmente mediante mutaciones puntuales de novo en los genes que codifican las proteínas diana.
- Resistencia a herbicidas: a menudo se origina por selección de variación poligénica preexistente relacionada con mecanismos metabólicos de resistencia no asociados al sitio de acción (NTSR).
- Resistencia a insecticidas: evoluciona mediante una combinación de variación preexistente y mutaciones de novo, dependiendo de la especie y del compuesto.
1.2 Hipótesis de la preadaptación
Un concepto central es la hipótesis de la preadaptación, que postula que la resistencia a insecticidas recicla adaptaciones que evolucionaron originalmente en el contexto de la guerra química entre insectos herbívoros y sus plantas hospedantes [7]. Hardy et al. [11] sometieron esta hipótesis a pruebas estadísticas comparativas y encontraron que:
- Los insectos con dietas más diversas (generalistas) tienden a evolucionar resistencia a una gama más amplia de insecticidas.
- La alimentación en plantas hospedantes con defensas químicas fuertes o diversas predispone a un linaje de insectos a desarrollar resistencia a insecticidas.
Estos hallazgos sugieren que los modelos genético-poblacionales convencionales, que generalmente no consideran las diferencias en la dieta de los herbívoros, podrían estar omitiendo factores importantes como la diversidad metabólica preexistente [11].
2. Mecanismos Moleculares de Resistencia
Los mecanismos de resistencia se clasifican en dos grandes categorías:
2.1 Resistencia en el sitio de acción (Target-Site Resistance, TSR)
Implica cambios en la proteína diana del plaguicida que reducen la unión del compuesto [5]. Puede deberse a:
- Mutaciones puntuales en los genes que codifican la proteína diana, alterando su estructura tridimensional y disminuyendo la afinidad por el plaguicida.
- Sobreexpresión de la proteína diana (aumento de copias del gen o mayor actividad transcripcional).
En el caso de los herbicidas, las mutaciones en los genes que codifican enzimas como la acetolactato sintasa (ALS) o la acetil-CoA carboxilasa (ACCase) son ejemplos clásicos de TSR que confieren resistencia a familias enteras de herbicidas [5].
2.2 Resistencia fuera del sitio de acción (Non-Target-Site Resistance, NTSR)
Engloba cualquier mecanismo que no implique la alteración de la proteína diana [6]. Incluye:
a) Metabolismo detoxificativo mejorado: Es el mecanismo más frecuente y complejo. Involucra tres familias enzimáticas principales [4]:
- Citocromos P450 monooxigenasas (P450s): catalizan reacciones de oxidación que constituyen la fase I del metabolismo de xenobióticos. La sobreexpresión o cambios en la secuencia de P450s confieren resistencia a múltiples clases de insecticidas y herbicidas.
- Esterasas: hidrolizan ésteres presentes en muchos insecticidas organofosforados y piretroides.
- Glutatión S-transferasas (GSTs): conjugan glutatión con compuestos electrofílicos, facilitando su excreción.
En malezas, la expresión de transcritos de múltiples P450s se encuentra sobreexpresada en biotipos resistentes a herbicidas inhibidores de ACCasa y ALS [6].
b) Alteraciones en la translocación: Por ejemplo, la resistencia a glifosato puede deberse a la secuestración del herbicida en vacuolas, impidiendo que alcance su sitio de acción en el cloroplasto [6].
c) Reducción de la penetración/absorción: Cambios en la cutícula o en la composición de la membrana celular que reducen la entrada del plaguicida.
d) Amplificación génica: En el pulgón Myzus persicae, la amplificación del gen de la esterasa E4 y FE4 confiere resistencia a insecticidas organofosforados y carbamatos [9]. Este fue uno de los primeros casos documentados de amplificación génica como mecanismo de resistencia.
3. Resistencia en Diferentes Grupos de Plagas
3.1 Insectos
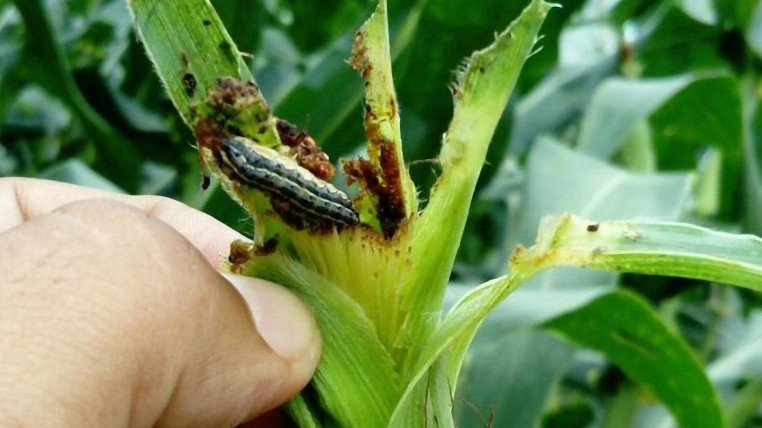
La resistencia a insecticidas está extremadamente extendida. Un caso emblemático es el del pulgón Myzus persicae, que ha desarrollado al menos siete mecanismos de resistencia independientes a diferentes clases de insecticidas, incluyendo resistencia metabólica por esterasas amplificadas, mutaciones en el sitio de acción de los receptores de acetilcolina (neonicotinoides) y canales de sodio (piretroides) [9].
En la polilla de la manzana Cydia pomonella, la resistencia se ha documentado a nivel global contra múltiples clases de insecticidas, con mecanismos que incluyen tanto TSR como NTSR mediados por P450 y GSTs [12].
Las adaptaciones a plantas hospedantes tóxicas han jugado un papel fundamental en la evolución de la resistencia en insectos, ya que la exposición prolongada a compuestos secundarios de las plantas puede “cebar” a los insectos herbívoros para tolerar mejor los insecticidas sintéticos [7].
3.2 Malezas (Herbicidas)
La resistencia a herbicidas es un problema creciente. El glifosato, el herbicida más utilizado a nivel mundial, ha visto comprometida su eficacia por la evolución de resistencia en más de 40 especies de malezas [2]. El cambio hacia cultivos genéticamente modificados tolerantes a glifosato, adoptados en más del 90% de las hectáreas de maíz, soja y algodón en EE.UU. hacia 2014, intensificó el uso de este herbicida y precipitó la crisis de resistencia [2].
Un hallazgo crítico es que el uso de mezclas de herbicidas, aunque se promueve como estrategia para retrasar la resistencia especialista (TSR), puede promover la evolución de mecanismos generalistas de resistencia (NTSR metabólica). Comont et al. [8] demostraron en la maleza Alopecurus myosuroides (cola de zorra) que un mayor uso de mezclas de herbicidas se asocia con niveles más bajos de resistencia especialista pero niveles más altos de resistencia generalista mediada por metabolismo mejorado. Esto revela una disyuntiva evolutiva importante: las estrategias diseñadas para frenar un tipo de resistencia pueden inadvertently favorecer otro.
3.3 Hongos (Fungicidas)
En contraste con insecticidas y herbicidas, la resistencia a fungicidas suele basarse predominantemente en mutaciones puntuales en los genes diana [1]. Sin embargo, se están descubriendo cada vez más casos de resistencia metabólica mediada por transportadores ABC y otras proteínas de membrana que bombean el fungicida fuera de la célula fúngica.
4. Costos de Adaptación (Fitness Cost)
La resistencia a plaguicidas a menudo conlleva un costo biológico (fitness cost). Los individuos resistentes pueden tener menor viabilidad, fecundidad o competitividad en ausencia del plaguicida en comparación con los individuos susceptibles. Sin embargo, estos costos son muy variables y pueden ser mitigados por la evolución de genes modificadores que restauran parcialmente la eficacia biológica. En malezas resistentes a herbicidas, se han documentado costos en la tasa de crecimiento, producción de semillas y eficiencia fotosintética, aunque su magnitud depende del mecanismo de resistencia concreto [1].
5. Detección y Monitoreo de la Resistencia
La detección temprana de la resistencia es crucial para implementar estrategias de manejo efectivas. Existen diversos métodos [10]:
- Bioensayos: exponen organismos a dosis crecientes del plaguicida y determinan la dosis letal.
- Métodos bioquímicos: miden la actividad de enzimas detoxificativas (P450s, GSTs, esterasas).
- Métodos moleculares: PCR específica de alelos, secuenciación de ADN, y PCR cuantitativa para detectar mutaciones puntuales o sobreexpresión génica. Tecnologías emergentes como la secuenciación de alto rendimiento (NGS) están permitiendo caracterizar el perfil transcriptómico completo de poblaciones resistentes [10].
6. Manejo de la Resistencia: El Desafío Actual
El manejo integrado de plagas (MIP, o IPM por sus siglas en inglés) se presenta como el paradigma más prometedor para enfrentar la resistencia. Karlsson Green et al. [3] argumentan que es crucial integrar un marco evolutivo en el MIP para desarrollar estrategias de protección de cultivos que sean sostenibles a largo plazo. Esto implica:
- Diversificación de métodos de control: rotación de plaguicidas con diferentes modos de acción, uso de mezclas (con cautela ante la disyuntiva evolutiva mencionada), y combinación con métodos no químicos (control biológico, cultural, mecánico).
- Refugios: áreas sin tratar que mantengan poblaciones susceptibles, diluyendo la frecuencia de alelos de resistencia.
- Monitoreo continuo: para detectar cambios en la frecuencia de resistencia antes de que se convierta en un problema agronómico.
- Enfoque sociobiológico: Gould et al. [2] enfatizan que el problema no es solo biológico; los factores económicos, sociopolíticos y de comportamiento humano son barreras igualmente importantes para la implementación de prácticas sostenibles.
La resistencia a plaguicidas es un problema “perverso” porque nuestras soluciones ad hoc (nuevos plaguicidas) generan inevitablemente nuevos problemas de resistencia, y porque los incentivos económicos a corto plazo chocan con la sostenibilidad a largo plazo [2].
Conclusiones
La resistencia a los plaguicidas es un fenómeno evolutivo inevitable bajo la intensa presión selectiva que ejerce la agricultura moderna. Comprender sus orígenes evolutivos (mutaciones de novo vs. variación preexistente), sus bases moleculares (TSR vs. NTSR), y las disyuntivas asociadas a diferentes estrategias de manejo (especialistas vs. generalistas) es fundamental para diseñar intervenciones más efectivas. El desafío actual no es solo biológico y genético, sino también socioeconómico: necesitamos alinear los incentivos de corto plazo con las prácticas sostenibles de largo plazo para evitar que la evolución de las plagas supere nuestra capacidad de respuesta.
Deja una respuesta
Lo siento, debes estar conectado para publicar un comentario.